1YR企业会员
发布人:杭州斯达特生物科技有限公司
发布日期:2026/10/6 11:23:21
乳酸化不是配角。H3K18 位点的乳酸化,一头连着糖酵解,一头连着基因转录,在炎症、肿瘤和细胞重编程里反复出现。它到底怎么被写入,又怎么被读取?
肿瘤细胞的Warburg效应导致大量乳酸积累,长期以来乳酸被视为代谢废物。2019年,芝加哥大学赵英明团队在《Nature》率先报道,乳酸可作为前体驱动一种新型组蛋白翻译后修饰,赖氨酸乳酸化,其中组蛋白H3第18位赖氨酸的乳酸化是代表性修饰之一。
研究证实,补充葡萄糖、抑制线粒体呼吸或低氧处理均可增强细胞内乳酸水平并同步上调H3K18la。在M1型巨噬细胞极化后期,H3K18la在稳态基因启动子区富集,促进修复表型转化,提示其作为"代谢计时器"的功能。
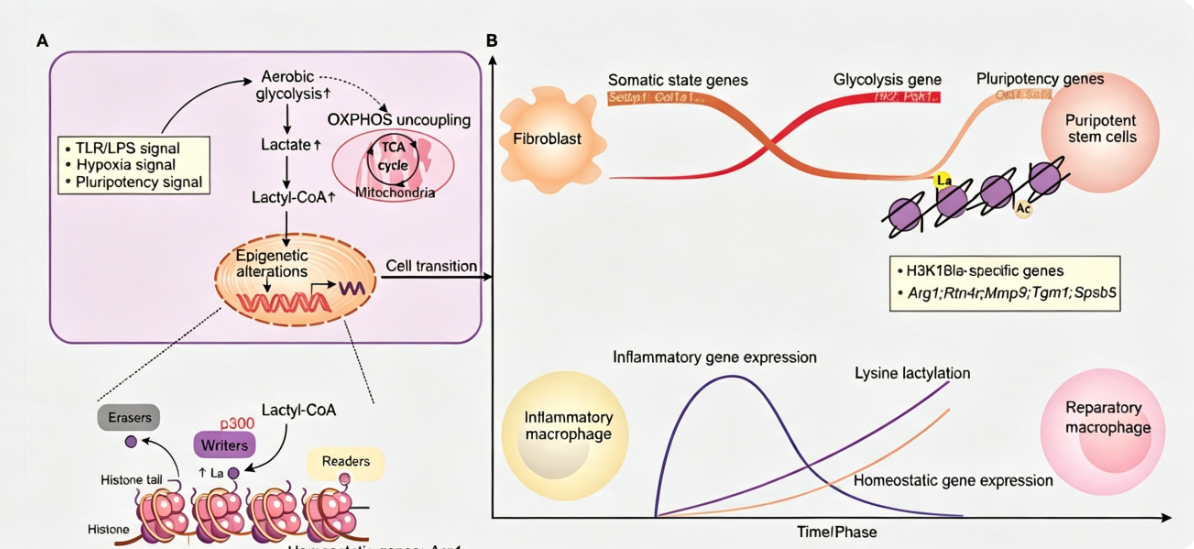
图示:H3K18乳酸化(图片来源:斯达特官网技术软文)
H3K18la的动态水平由"写入器"和"擦除器"共同维持。p300被证实是关键的组蛋白乳酸转移酶候选者,可直接催化乳酰基团从乳酰辅酶A转移至组蛋白赖氨酸。在体细胞重编程过程中,p300在多能性基因(如Oct4、Sall4、c-Myc)启动子区高度富集H3K18la,而在体细胞基因处则无此富集,提示其位点特异性。
HDAC1-3等去乙酰化酶则被证实具有去乳酸化活性,可移除该修饰。H3K18la的动态变化与H3K27ac等乙酰化标记呈现不同的时间动力学,暗示两者在功能上不完全重叠,可能独立或协同调控基因表达。
在炎症应答中,H3K18la展现出时序性调控特征。在M1巨噬细胞极化早期,促炎信号驱动经典炎症基因表达;而随着乳酸积累,H3K18la在后期于稳态和修复相关基因(如Arg1)的启动子区富集,促进M2样表型转化,推动炎症消退。
在肿瘤相关巨噬细胞中,肿瘤源性乳酸通过提高H3K18la水平,驱动TAM向促肿瘤的M2表型极化,表达Arg1和VEGF,支持血管生成和免疫抑制。在肺纤维化模型中,博来霉素处理的小鼠肺部H3K18la水平升高,提示其参与纤维化进程中的代谢-表观调控。
在肿瘤微环境中,高糖酵解产生的乳酸通过H3K18la重塑免疫细胞功能。黑色素瘤和肺癌模型中,肿瘤相关巨噬细胞的H3K18la水平与Arg1表达呈正相关,而与组蛋白乙酰化水平无关,突显了H3K18la的特异性功能。
在细胞重编程中,诱导多能干细胞过程中伴随从氧化磷酸化到糖酵解的代谢转换,H3K18la在多能性基因启动子区富集,与H3K27ac协同调控染色质开放状态,促进多能性基因激活。
H3K18la领域仍存在关键空白:其特异性"读取器"尚未明确;细胞核内局部乳酸浓度如何调控位点选择性乳酸化仍不清楚;H3K18la与其他酰化修饰(如乙酰化、巴豆酰化)在相同赖氨酸位点上的竞争与串扰机制有待阐明。未来研究需结合高分辨率质谱、CUT&Tag和单细胞表观技术,解析H3K18la在特定细胞类型和病理阶段的动态功能。
乳酸化富集对缓冲体系敏感,洗涤条件没控好,背景就上来了。斯达特(Starter)列有 Pan-PTM Binding/Wash Buffer 1 与 Pan-PTM Wash Buffer 2,用于配套的富集与洗涤流程,配合泛乳酸化抗体可支撑 H3K18la 相关的修饰检测。相关货号与规格如下:
| 货号 | 产品名称 | 商品参数 | 参考货期 | 规格 | 价格 |
|---|---|---|---|---|---|
| S0F0022 | Pan-PTM Binding/ Wash Buffer 1 | 标记 : Unconjugated | 现货 | ¥100 | |
| S0F0023 | Pan-PTM Wash Buffer 2 | 标记 : Unconjugated | 现货 | ¥100 |
数据来源:斯达特(Starter)官网产品页 S0F0022、S0F0023,信息检索时间2026-10-06
H3K18la 的调控机制还在补全,"读取器"也没定论。机制落地之前,能测出可靠的修饰水平才是第一步。富集缓冲体系、抗体特异性、样本处理,三样里哪样松了,趋势都会失真。你测 H3K18la,是信号太弱,还是非特异背景太高?
相关新闻资讯