2YR企业会员
发布人:武汉恩玑生命科技有限公司
发布日期:2026/10/10 13:48:00
这篇文献系统总结了 IL‑1家族细胞因子在炎症性疾病中的作用机制、关键调控环节,以及靶向这些细胞因子的治疗策略和临床研究进展。文章发表于 Nature Reviews Rheumatology,属于以既往基础研究、动物实验、遗传性疾病证据和临床试验为依据的综述性文章。
文献核心问题是:IL‑1家族成员如何被激活、如何通过受体驱动不同类型的免疫反应,以及在什么疾病背景下阻断这些信号最有可能获益。
文献的主要结论:
IL‑1 家族共有 11个成员,包括促炎激动剂、受体拮抗剂及具有抗炎作用的成员;不同成员的生物学功能并不相同。
细胞因子的成熟、释放、受体结合及内源性抑制均受到多层调控。炎症过强或负调控不足可导致组织损伤和疾病。
靶向治疗在部分疾病中已取得明确临床成功,尤其是 IL‑1通路相关单基因自身炎症病和 IL‑36通路相关泛发性脓疱型银屑病(GPP)。
同一细胞因子在不同组织、疾病阶段和患者亚群中的作用可能不同;未来治疗需要结合生物标志物、遗传背景及组织环境进行分层。
IL是 interleukin(白细胞介素)的缩写。IL‑1家族由 11个细胞因子成员构成,参与先天免疫、炎症启动、免疫细胞活化以及组织屏障防御。文献重点讨论了以下几类分子。
(1)IL‑1α、IL‑1β
急性炎症与炎症放大,促进炎症基因表达、免疫细胞募集和炎症介质产生。IL‑1β的成熟释放与炎症小体关系密切。
(2)IL‑18
Ⅰ型免疫与 IFN‑γ产生;促进 NK细胞和活化 T细胞等的免疫反应,在 Still病、巨噬细胞活化综合征等高炎症状态中尤其值得关注。
(3)IL‑33
组织损伤信号与 Ⅱ型免疫;常见于屏障组织,可在细胞损伤时释放;参与过敏性炎症、组织修复以及部分风湿性疾病过程。
(4)IL‑36α、IL‑36β、IL‑36γ
上皮屏障炎症与中性粒细胞募集;特别参与皮肤炎症,在泛发性脓疱型银屑病中具有明确的致病作用。
(5)IL‑1Ra、IL‑36Ra、IL‑37、IL‑38
炎症负调控;IL‑1Ra和 IL‑36Ra是受体拮抗剂;IL‑37和 IL‑38通常被认为具有抗炎作用,但部分作用机制仍未完全明确。
需要注意,IL‑1 家族并不是一个功能完全相同的分子集合。不同成员具有不同的受体、靶细胞和生物学效应,不能简单地将所有 IL‑1家族成员都视为促炎因子。
文献强调了三个共同特征。
第一,能够快速感知组织损伤。许多 IL‑1家族成员在上皮细胞、角质形成细胞等屏障组织中表达。皮肤或黏膜发生损伤后,细胞因子可以被迅速释放,启动局部炎症。
第二,能够连接病原体识别与炎症放大。IL‑1家族受体与 Toll样受体(TLR)具有共同的 TIR结构域,并可通过 MyD88、IRAK、NF‑κB和 MAPK等信号节点调节炎症反应。
第三,具有多层次的负反馈调控。受体拮抗剂、诱饵受体、可溶性受体以及蛋白水解加工共同决定了细胞因子的活性。如果这些机制失衡,就可能出现炎症过度或持续激活。
因此,研究 IL‑1家族不仅是研究单一炎症因子的表达变化,更是研究炎症如何被启动、放大、限制,以及如何通过药物进行干预。
这篇综述主要回答四个问题:
(1) IL‑1家族不同成员如何被合成、激活、释放并传递炎症信号?
(2) 人类遗传性自身炎症疾病及其他疾病证据,如何证明这些分子具有致病作用?
(3) 针对 IL‑1、IL‑18、IL‑33和 IL‑36的药物有哪些,临床研究取得了什么结果?
(4) 为什么同样属于 IL‑1家族,不同细胞因子在不同疾病中的治疗效果却存在明显差异?
文章的结构围绕四类主要细胞因子展开:
(1) IL‑1α、IL‑1β和 IL‑1Ra;
(2) IL‑18;
(3) IL‑33;
(4) IL‑36α、IL‑36β、IL‑36γ和 IL‑36Ra。
最后,作者从精准治疗、生物标志物以及联合靶向等角度讨论未来发展方向。
(1) 路径 A:细胞损伤与 Alarmins释放
组织损伤、坏死或屏障破坏→细胞内 IL‑1α、IL‑33等释放→与相应受体结合,激活免疫及炎症反应。
机制要点:这类分子可作为警报素(alarmins),将组织损伤转化为免疫系统能够识别的信号。IL‑33还具有复杂的蛋白水解和氧化调控。
(2) 路径 B:炎症小体与细胞焦亡
病原体或细胞内危险信号→TLR–NF‑κB预激活,增加 pro‑IL‑1β等前体→炎症小体组装→ Caspase‑1激活→IL‑1β、IL‑18成熟;GSDMD形成膜孔→细胞因子释放与细胞焦亡,进一步放大炎症。
机制要点:炎症小体不只是一个信号分子,而是由传感器、接头蛋白和半胱天冬酶等组成的多蛋白复合物。
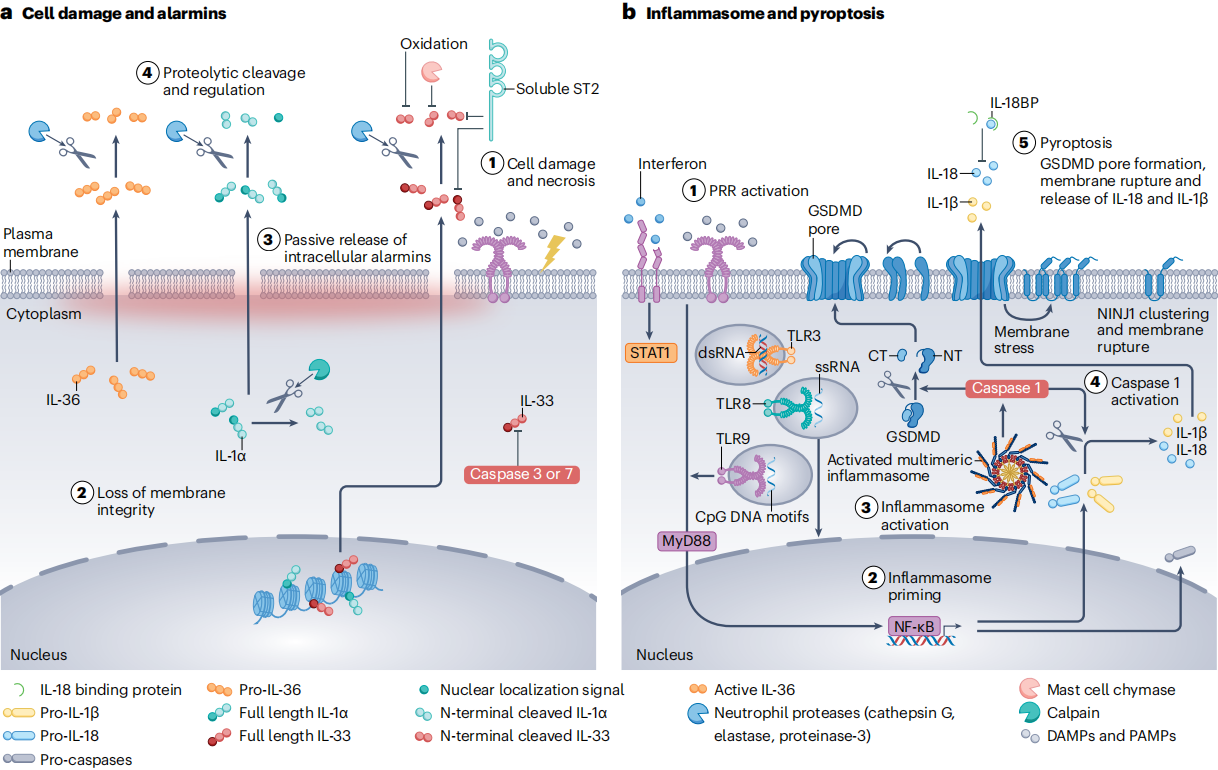
IL‑1β通常先以无活性的前体形式 pro‑IL‑1β存在。它的产生和成熟不是同一个过程。
第一信号:前体合成。 TLR等先天免疫受体激活 NF‑κB,促进 pro‑IL‑1β的表达。
第二信号:前体加工。 炎症小体激活后,Caspase‑1对 pro‑IL‑1β进行切割,产生具有生物活性的成熟 IL‑1β。
释放过程: Gasdermin D(GSDMD)被切割后形成膜孔,促进 IL‑1β和 IL‑18释放;严重时可引发细胞焦亡。
这意味着,检测到 IL1B mRNA上调,并不等于已经证明成熟 IL‑1β大量释放。要证明炎症小体通路被激活,需要结合前体与成熟蛋白、Caspase‑1 活化以及 GSDMD裂解等证据。
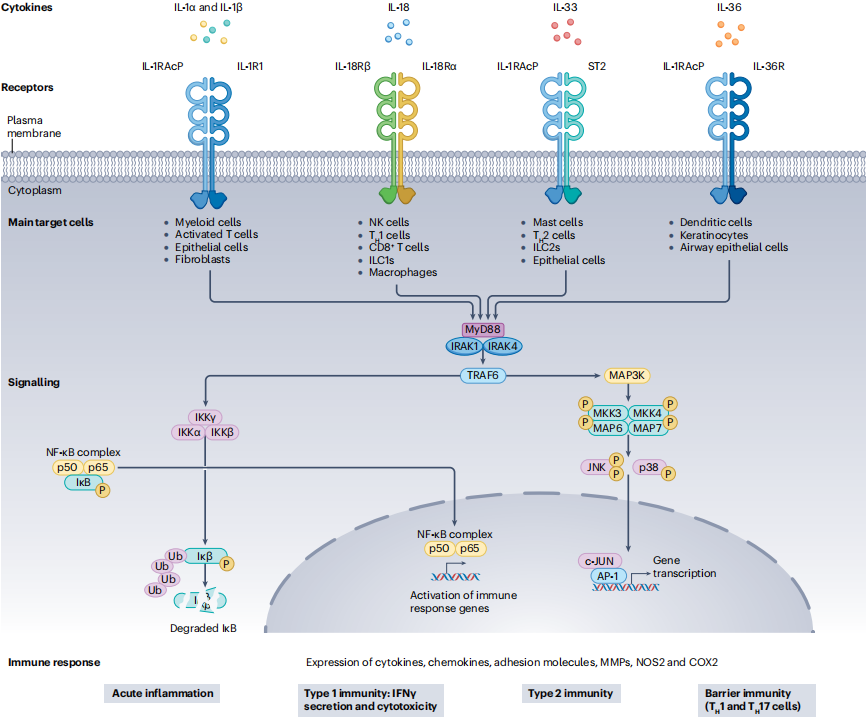
IL‑1、IL‑18、IL‑33和 IL‑36的受体体系并不完全相同,但它们具有部分共同的下游信号机制。
细胞因子与特异性受体结合→招募辅助受体与 MyD88→IRAK1/ IRAK4 → TRAF6→NF‑κB:炎症基因转录;MAPK:p38、JNK等→细胞因子、趋化因子、黏附分子及其他炎症介质表达。
这一通路解释了为什么不同 IL‑1家族成员虽然具有不同的受体和组织效应,却可能产生相似的下游炎症表现。但需要区分:共用部分信号通路,不代表不同细胞因子的功能完全相同,也不代表阻断它们会获得相同的临床效果。
这部分是文章中临床应用证据较为丰富的章节。IL‑1α与 IL‑1β的重要区别:
| 比较维度 | IL‑1α | IL‑1β |
|---|---|---|
| 前体蛋白 | 约 31 kDa | 约 31 kDa |
| 主要生物学特点 | 可作为细胞损伤警报信号 | 成熟过程受严格调控 |
| 活化特点 | 蛋白水解可增强胞外活性 | 通常需要蛋白水解加工才能成为活性细胞因子 |
| 炎症小体依赖性 | 并非主要依赖经典炎症小体加工 | 经典成熟途径与炎症小体、Caspase‑1密切相关 |
| 研究意义 | 组织损伤、部分皮肤炎症 | 炎症小体相关自身炎症、痛风及多种系统性炎症 |
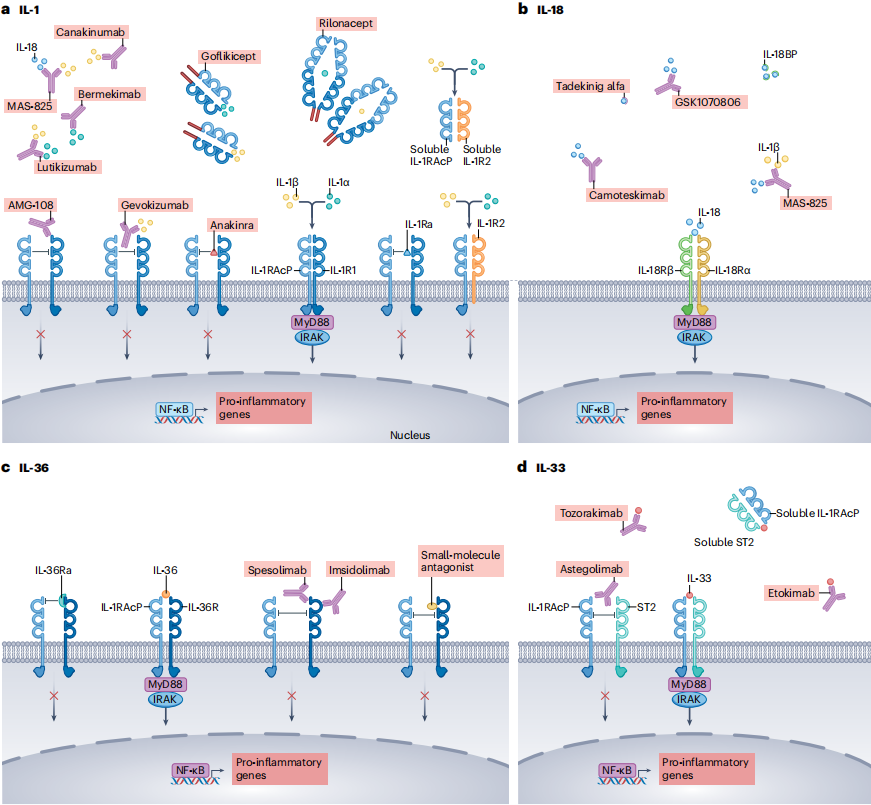
两者均可通过 IL‑1R1受体体系启动炎症信号,但并不意味着它们在所有疾病中的贡献相同。IL‑1Ra的作用: IL‑1 receptor antagonist是天然的受体拮抗剂。它与 IL‑1R1结合,却不触发正常的促炎信号,从而阻止 IL‑1α和 IL‑1β发挥作用。这也解释了为什么重组 IL‑1Ra药物阿那白滞素(anakinra)可以用于抑制 IL‑1相关炎症。
文章特别强调单基因自身炎症性疾病,因为它们可以提供比单纯检测细胞因子升高更强的因果证据。
NLRP3功能获得性突变
疾病:冷吡啉相关周期性综合征(CAPS);NLRP3炎症小体异常活化,促使成熟 IL‑1β过度产生,可表现为发热、皮疹、关节症状;严重类型还可出现中枢神经系统炎症。
MEFV、MVK等基因相关异常
疾病:家族性地中海热(FMF)、甲羟戊酸激酶缺乏症(MKD)等;这些疾病可通过不同机制影响炎症小体活化阈值或调控,部分患者的临床表现对 IL‑1阻断治疗有反应。
IL1RN功能缺失
疾病:IL‑1受体拮抗剂缺乏症(DIRA);内源性抑制机制失效,导致 IL‑1信号过度活跃,可出现新生儿起病的系统性炎症、多灶性骨炎和皮肤表现。
IL36RN功能缺失
疾病:IL‑36受体拮抗剂缺乏症(DITRA);IL‑36信号缺乏足够的负调控,导致严重的中性粒细胞性炎症及泛发性脓疱型银屑病相关表现。
这些疾病提供了一个重要的研究范式:当促炎通路被异常激活,或其天然抑制机制失效时,会出现具有特征性的疾病表型;而针对相应通路的治疗能够改善疾病,则进一步支持该通路具有致病意义。不过,遗传变异、细胞因子水平升高和药物治疗有效属于不同层级的证据,解读时仍需分别判断。
文献列举的研究显示:
(1) 在 CAPS等 IL‑1相关单基因自身炎症疾病中,IL‑1阻断有较明确的疗效。
(2) 在痛风中,尿酸盐结晶可以激活 NLRP3炎症小体,进而促进 IL‑1β产生,因此阻断 IL‑1通路具有机制基础。
(3) 在类风湿关节炎(RA)中,anakinra的临床疗效总体较为有限,与 TNF拮抗剂相比效果较弱。
(4) 在膝关节和手部骨关节炎中,IL‑1阻断的大多数临床试验未达到理想结果。
关键解读:即使某种细胞因子参与疾病,也不代表它是该疾病最关键、最适合药物干预的驱动因素。疾病机制的异质性、冗余信号通路、治疗时机和靶点在具体组织中的作用,都可能影响疗效。
IL‑18的成熟与释放和 IL‑1β有相似之处,均与炎症小体–Caspase‑1通路有关。但 IL‑18与 IL‑1β并不完全相同:IL‑18可在多种细胞中组成性表达,且在先天免疫和适应性免疫中均具有重要作用。
其典型功能包括:
(1) 促进 NK细胞及活化 T细胞产生 IFN‑γ。
(2) 增强细胞毒性免疫反应。
(3) 在不同细胞因子环境下参与其他免疫反应。
(4) 在部分高炎症疾病中与巨噬细胞活化综合征(MAS)密切相关。
这是全文一个非常重要的概念。
机体具有天然的 IL‑18结合蛋白(IL‑18BP),能够以高亲和力结合成熟 IL‑18,限制其与受体结合。因此,需要区分两个指标:
Total IL‑18(总 IL‑18):包括游离状态和与 IL‑18BP结合的 IL‑18。
Free IL‑18(游离 IL‑18):未被 IL‑18BP结合的 IL‑18。
可以理解为:总 IL‑18升高代表游离与结合状态的 IL‑18都计入其中;游离 IL‑18升高提示有更多 IL‑18未被天然结合蛋白中和,但仍需结合临床和其他指标解读。如果 IL‑18BP的结合能力足以覆盖产生的 IL‑18,即使总 IL‑18很高,游离 IL‑18仍可能很低。反之,当产生量超过抑制能力时,游离 IL‑18可能显著增加。
文献指出,Still病(包括全身型幼年特发性关节炎与成人 Still病)患者的 IL‑18水平可以明显升高,且较高水平与 MAS风险和较长病程相关。部分其他自身炎症疾病虽然总 IL‑18升高,但游离 IL‑18仍很低。这提示研究 IL‑18时,单独检测总蛋白未必足以反映实际生物学活性。
| 药物 | 作用方式 | 文献所述证据 |
|---|---|---|
| Tadekinig alfa | 重组人 IL‑18BP | 成人 Still病的 II期临床研究显示临床和生物学指标改善;部分高炎症病例报告有积极结果 |
| GSK1070806 | 抗 IL‑18单克隆抗体 | 多项适应证的研究结果尚未公布或结果有限 |
| Camoteskimab | 抗 IL‑18单克隆抗体 | 部分临床研究已完成,但不同适应证的结果仍不完整 |
| MAS825 | 双特异性抗体,同时靶向 IL‑1β与 IL‑18 | 部分严重自身炎症病例报告显示积极结果,但 COVID‑19肺炎相关 II期研究未改善主要终点 |
文献同时强调,IL‑18 抑制剂尚未获得文中所述的正式上市批准,相关临床开发仍在推进。这一章节的主要启示是:IL‑18的病理意义不仅取决于产生多少,还取决于天然抑制系统是否足以限制其活性。这也意味着生物标志物选择需要考虑游离与总量的区别。
IL‑33常存在于屏障组织细胞中,也可以定位于细胞核。发生细胞损伤或坏死时,IL‑33可被释放到细胞外,作为警报素发挥作用。它与 ST2受体结合后,招募 IL‑1RAcP,激活下游信号。
组织损伤,IL‑33释放→IL‑33 + ST2 + IL‑1RAcP→MyD88 相关信号通路→Ⅱ 型免疫:过敏性炎症相关反应;组织反应:修复、上皮再生等。
IL‑33的活性受到多层次调节:某些蛋白酶切割能够增强其活性,而其他蛋白酶加工可使其失活;氧化及二硫键形成也会限制其与 ST2的结合。可溶性 ST2则能够作为诱饵受体中和 IL‑33。
文献总结了以下主要研究方向:
(1) 哮喘、特应性皮炎和过敏性鼻炎: IL‑33–ST2轴与 Ⅱ型免疫相关疾病密切相关。
(2) 类风湿关节炎:患者血液和滑液中的 IL‑33水平可升高,并与疾病活动度及部分严重程度指标相关。
(3) 系统性硬化症: IL‑33与纤维化、血管功能障碍等过程有关。
(4) 脊柱关节炎: IL‑33可能参与新骨形成。
(5) 慢性阻塞性肺疾病(COPD):靶向 IL‑33或 ST2的药物已进入临床研究,并在部分研究人群中显示积极结果。
需要特别注意,IL‑33与关节炎的关系具有明显的情境依赖性。某些动物模型中,抑制 ST2能够减轻关节炎;但另一些实验中,IL‑33缺失并未显著减轻关节炎,部分条件下 IL‑33甚至可能通过调节性 T细胞等途径发挥保护作用。因此,IL‑33不能被简单归类为在所有炎症性疾病中都应抑制的促炎因子。
文章讨论了多种靶向 IL‑33或 ST2的药物,包括:
(1) Tozorakimab:直接靶向 IL‑33。
(2) Astegolimab:靶向 ST2受体。
(3) Etokimab:抗 IL‑33单克隆抗体。
(4) Itepekimab:抗 IL‑33单克隆抗体。
部分药物在 COPD、严重哮喘等适应证中获得了积极的临床研究结果,但不同研究的疗效并不一致。在风湿性疾病方面,文章指出,当时尚无专门针对 IL‑33–ST2轴的风湿病临床试验。这一部分的核心结论是:靶向 IL‑33的价值取决于具体疾病、靶组织及免疫环境,而不是仅凭 IL‑33表达升高就能确定治疗方向。
IL‑36家族包括三个激动剂:IL‑36α、IL‑36β、IL‑36γ,以及一个受体拮抗剂 IL‑36Ra。它们主要参与上皮屏障炎症,尤其与角质形成细胞、中性粒细胞及局部免疫反应有关。
其特点是:IL‑36的前体蛋白活性较低,需要通过蛋白水解加工增强活性。中性粒细胞释放的 Cathepsin G、弹性蛋白酶和 Proteinase‑3等蛋白酶可参与这一过程。
皮肤屏障损伤或炎症刺激→角质形成细胞产生 IL‑36前体→中性粒细胞蛋白酶加工 IL‑36→IL‑36R–IL‑1RAcP信号激活→炎症介质表达、更多中性粒细胞募集。形成正反馈:中性粒细胞既是炎症反应的参与者,也能通过释放蛋白酶促进 IL‑36活化,进一步放大局部炎症。
IL36RN编码 IL‑36受体拮抗剂 IL‑36Ra。当 IL36RN出现导致功能缺失的突变时,IL‑36信号缺乏足够的天然抑制,可能造成严重的皮肤及系统性炎症。这类疾病被称为 DITRA。这一遗传性疾病证据支持 IL‑36通路在特定疾病中具有直接的致病作用。此外,在泛发性脓疱型银屑病的皮损中,IL‑36α、IL‑36β和 IL‑36γ的表达可明显增加,并与中性粒细胞浸润和疾病严重程度相关。
Spesolimab:抗 IL‑36R单克隆抗体
文献指出,Spesolimab 已获美国 FDA批准用于泛发性脓疱型银屑病发作的治疗。其临床疗效为 IL‑36信号在该疾病中的关键作用提供了有力的治疗学证据。
Imsidolimab:另一种抗 IL‑36R单克隆抗体
文献总结了其在脓疱型和炎症性皮肤病中的积极临床表现,但其他适应证的结果并不一致,且仍有研究需要进一步评估。
文章还提及靶向 IL‑36R的小分子拮抗剂。这类药物有望改善组织穿透性,并具有口服给药的潜在优势,但其临床价值仍需要进一步验证。
文献指出,IL‑36在类风湿关节炎等风湿性疾病中的致病作用并不像在泛发性脓疱型银屑病中那样明确。此外,IL‑36在肠道炎症中的作用也比较复杂:它既可能放大黏膜炎症,在某些情况下又可能参与肠道损伤后的修复过程。这说明,一个通路在某种疾病中是核心驱动因素,不意味着它在所有疾病中都是必要的。
| 靶点 | 主要机制 | 代表性疾病或场景 | 靶向治疗的证据特点 |
|---|---|---|---|
| IL‑1α / IL‑1β | 炎症启动、炎症小体相关炎症放大 | CAPS、部分自身炎症病、痛风 | 部分疾病已有明确疗效,其他适应证效果不一 |
| IL‑18 | IFN‑γ产生、Ⅰ型免疫、高炎症状态 | Still病、MAS、部分 IL‑18 相关自身炎症病 | 有较强的机制依据和初步临床信号,仍需更多临床证据 |
| IL‑33 | 组织损伤警报、Ⅱ型免疫、组织修复 | 哮喘、COPD、特应性皮炎及部分风湿性疾病 | 部分呼吸系统适应证研究积极,其他场景结果不一致 |
| IL‑36 | 屏障炎症、角质形成细胞与中性粒细胞正反馈 | 泛发性脓疱型银屑病、部分皮肤及肠道炎症 | 在 GPP中有明确的临床验证,其他适应证仍在研究 |
| 靶标 | 货号 | 产品名称 | 反应种属 | 应用 |
|---|---|---|---|---|
| IL‑1α | APRab12528 | IL‑1α Rabbit Polyclonal Antibody | Human,Mouse,Rat | IHC,ICC/IF,ELISA |
| IL‑1β | APRab12530 | IL‑1β Rabbit Polyclonal Antibody | Human,Mouse,Rat | WB,IHC,ICC/IF,ELISA |
| IL‑18 | AMRe85703 | IL‑18 Rabbit Monoclonal Antibody | Human | WB,IHC |
| IL‑33 | AMRe83700 | IL‑33 Rabbit Monoclonal Antibody | Mouse,Rat | WB,IHC,ICC/IF,ICC |
| IL‑36β | APRab00526 | IL‑36 beta Rabbit Polyclonal Antibody | Human | WB,IHC,ELISA |
| IL‑1RA | AMRe12524 | IL1RA (3V4) Rabbit Monoclonal Antibody | Human,Mouse,Rat | WB,IHC,ICC/IF,FC,IP |
| IL37 | AMM83310 | IL37 Mouse Monoclonal Antibody | Human | WB |
除了直接中和细胞因子,文献还总结了其他干预方式。
策略一:直接中和细胞因子
例如抗 IL‑1β、抗 IL‑18或抗 IL‑33单克隆抗体。优点是靶点明确,但疗效可能受组织分布、靶点丰度和疾病机制影响。
策略二:阻断受体信号
例如 IL‑1受体拮抗剂 Anakinra,以及靶向 IL‑36R的 Spesolimab。阻断受体可以限制对应信号的传递。
策略三:抑制上游炎症小体
NLRP3小分子抑制剂旨在减少炎症小体活化,从而影响成熟 IL‑1β、IL‑18等炎症介质的产生。这种方式可能影响多个下游反应,但也需要评估对宿主防御的影响。
策略四:联合靶向
例如同时抑制 IL‑1β与 IL‑18,或探索 IL‑36与 IL‑23–IL‑17通路的联合干预。其目标是限制炎症网络中的协同或反馈机制,但是否优于单靶点治疗仍需临床验证。
文章还提醒,靶向炎症通路时不能只考虑抑制炎症的收益,也要考虑病原体防御和组织修复。理想的治疗策略不是尽可能广泛地关闭免疫系统,而是以可接受的安全性控制真正驱动疾病的病理环节。
文献的 Future perspectives部分提出了几个重要方向。
从检测总量转向检测生物活性。以 IL‑18为例,游离 IL‑18与总 IL‑18的区别可能具有重要的临床意义。类似地,研究其他细胞因子时,也需要区分:
mRNA 是否增加;
前体蛋白是否增加;
成熟蛋白是否产生;
活性是否受到内源性抑制;
靶细胞是否表达相应受体;
下游信号是否真正被激活。
这些层次不能互相替代。
把遗传信息与生物标志物结合起来。文章强调,应整合炎症小体相关基因变异、IL36RN变异、游离 IL‑18水平以及细胞因子诱导的转录特征,来辅助疾病分层和治疗选择。这一思路有助于回答:患者的炎症究竟主要由哪个通路驱动?阻断该通路是否具有临床价值。
参考文献
Advances in targeting IL‑1 family cytokines for the treatment of inflammatory diseases. Gabay C, et al. Nat Rev Rheumatol. 2026. [PMID: 42426206]
相关新闻资讯